
 15801534258
 info@nebulabio.cn
15801534258
info@nebulabio.cn
在结构生物学与化学生物学的交叉领域,蛋白标记(Protein Labeling)并非简单的附加标签操作,而是一项在纳米尺度上进行的精密化学工程。其核心挑战在于:如何在不扰动蛋白天然折叠、不遮挡活性位点、且不引发非特异性聚集的前提下,引入具有可检测或可操控物理化学性质的功能基团。实现这一目标,需要对蛋白表面残基的反应性分布、溶剂可及性以及偶联反应的动力学边界具备系统性理解。
最经典的蛋白标记策略依赖于天然氨基酸侧链的亲核反应性,其中赖氨酸与半胱氨酸是最常用的反应靶点。赖氨酸标记通常基于 N-羟基琥珀酰亚胺(NHS)酯化学。在弱碱性条件下,赖氨酸 ε-氨基发生去质子化,可对 NHS 酯羰基碳进行亲核攻击,形成稳定的酰胺键。这一反应效率高、操作简便,因此被广泛用于荧光标记和生物素化。然而,由于蛋白表面往往分布着多个溶剂可及赖氨酸,该策略本质上属于随机标记,容易引入分子异质性,限制其在定量动力学或单分子研究中的应用。
相比之下,半胱氨酸标记提供了更高的位点控制能力。利用马来酰亚胺或碘乙酰胺基团,可通过迈克尔加成或亲核取代反应与巯基形成稳定共价键。由于天然蛋白中游离半胱氨酸数量有限,科研人员可通过定点突变在特定位置引入唯一反应位点,从而实现近乎 1:1 的定点标记。但该体系对 pH 极为敏感,过高或过低的反应条件都会削弱选择性或反应效率。
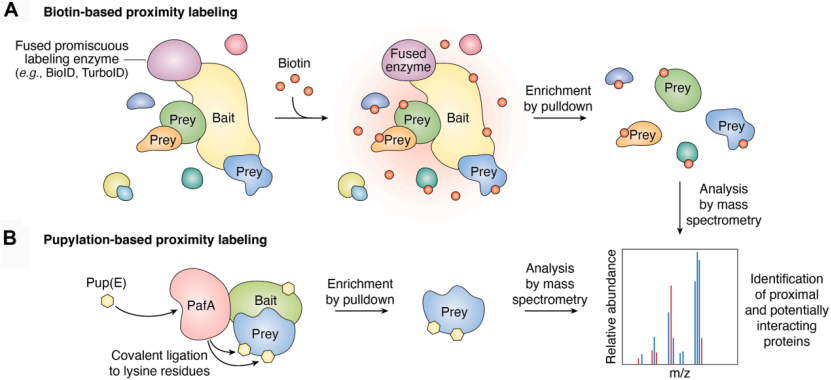
为克服传统化学偶联的随机性问题,酶法标记策略引入了生物催化的高度专一性。其中最具代表性的是生物素连接酶 BirA 标记体系。BirA 可识别特定的 AviTag 肽段,并在 ATP 驱动下将生物素共价连接至唯一赖氨酸残基。该过程几乎不影响蛋白其余区域的化学性质,能够在复杂体系中实现高度一致的标记产物。生物素与链霉亲和素之间的超高亲和力,使该体系成为蛋白固定化、单分子操纵与传感器构建的理想工具。
另一类常用方法是转肽酶介导的末端标记,如 Sortase A 系统。该酶可识别特定肽段并完成受控的肽键重组,特别适用于蛋白 N 端或 C 端的功能化修饰,在不干扰核心结构域的前提下引入多样化探针。
当标记需求扩展至细胞裂解液甚至活细胞环境时,传统化学反应往往因副反应而失效。生物正交化学正是在这一背景下展现出独特优势。通过遗传密码扩展技术,可将含有叠氮或应力炔基团的非天然氨基酸定点引入蛋白序列。这些官能团在生理条件下高度惰性,仅在彼此相遇时发生快速、选择性的点击反应。尤其是四嗪与反式环辛烯之间的逆电子需求 Diels–Alder 反应,其反应速率常数极高,允许在极低浓度下完成高效标记,避免了金属催化剂对蛋白结构的潜在损伤。这类反应为实时追踪蛋白动态行为提供了分子级工具。
在结构解析领域,蛋白标记的内涵进一步扩展为原子级替换。在 X 射线晶体学中,硒代甲硫氨酸通过提供强反常散射信号,成为解决相位问题的标准方法。其生化制备路径清晰,可实现高替换效率且对整体折叠影响较小。
在核磁共振研究中,引入 15N、13C 或 2H 等稳定同位素是解析大分子蛋白不可或缺的手段。通过全标记或选择性标记策略,可以有效降低谱图复杂度并延展可解析的分子量范围,使蛋白内部动力学信息得以被精准捕获。
总体而言,蛋白标记技术构成了一套融合有机化学、酶学与结构物理的综合方法体系。无论是化学偶联的普适性、酶法标记的精准性,还是生物正交反应的时空可控性,其共同目标始终一致:在尽可能不扰动蛋白自由能景观的前提下,实现信息输出的最大化。对这些分子机制的深入理解,是将蛋白从存在转化为可解析、可操控对象的关键桥梁。
| 了解更多信息,请联系邮箱: info@nebulabio.cn / 电话:+86-15801534258 |


